Début de l'article <= |
Le genre Diplotaxis (Brassicaceae)
|
Accueil du site Contact~JM |


En Provence nous rencontrons 3 espèces de Diplotaxis :
- Diplotaxis tenuifolia (L.) DC., 1821 ; la roquette jaune
- Diplotaxis erucoides (L.) DC., 1821 ; la fausse roquette, à fleur blanche
- Diplotaxis muralis (L.) DC., 1821 ; la roquette des murailles, à fleur jaune
Cette dernière (D. muralis) est moins grande, moins ligneuse et aussi moins fréquente. Nous trouvons les individus isolés sur substrat caillouteux. Elle fleurit de mai à octobre alors que les grandes Diplotaxis fleurissent de la fin de l'été et jusqu'au printemps si les gelées hivernales ne sont pas trop fortes. Nous n'avons jamais rencontré D. viminea
Localisation et abondance des peuplements
Les deux plus grandes roquettes, D. tenuifolia et D. erucoides sont abondantes dans les prairies (Fig1) et sur les talus où on trouve 4 à 6 plantes par m2.
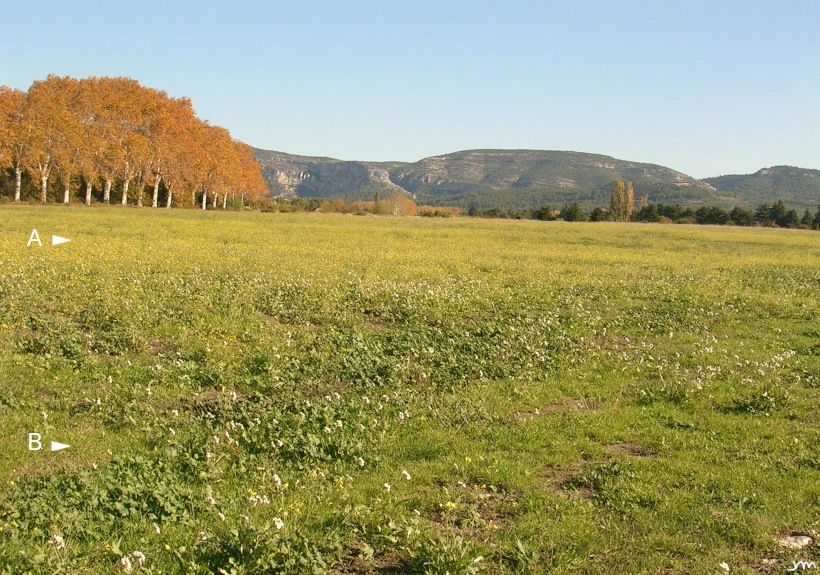
▲ Fig1: Peuplement de (A) Diplotaxis tenuifolia, (B) Diplotaxis erucoides.
Dans cette prairie inclinée vers le Sud, la roquette jaune occupe la zone haute, la mieux drainée alors qu'on retrouve la fausse roquette vers le bas dans un sol plus riche et plus argileux.
Dans une friche orientée vers le Sud-Ouest on trouve un peuplement de roquette jaune (Fig2). Par temps calme et ensoleillé toute cette friche sent le miel.
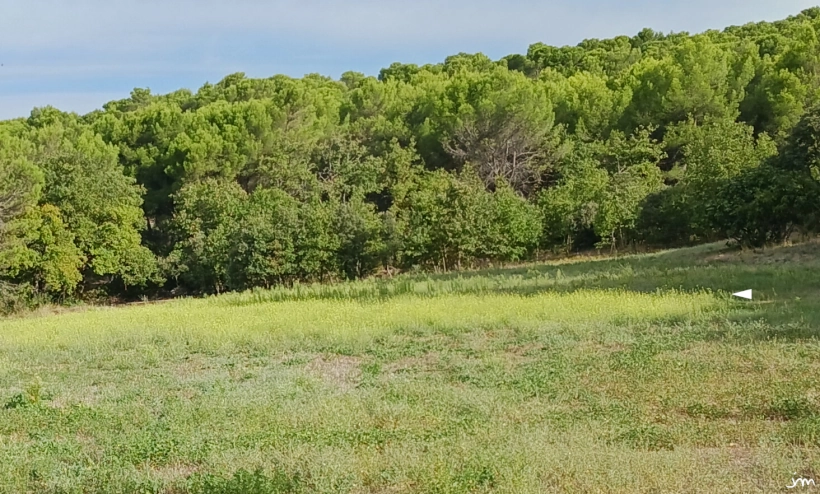
▲ Fig2: Peuplement de Diplotaxis tenuifolia.
En moyenne chaque pied porte 5 inflorescences ce qui accentue l'impression d'abondance.
Organisation florale des Diplotaxis
La fleur est caractéristique de la famille des Brassicacées avec 4 pétales disposés en croix et 6 étamines sur 2 verticilles (2 petites + 4 grandes) (Fig3).
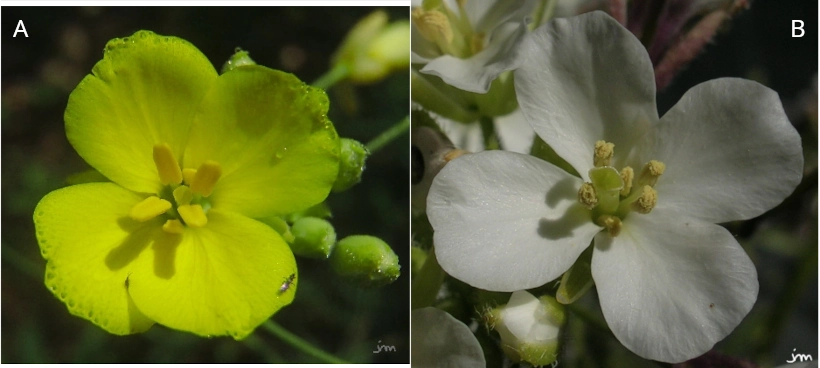
▲ Fig3: Fleur de (A) Diplotaxis tenuifolia, (B) Diplotaxis erucoides (Diamètre floral 18 mm).
Le calice est constitué de 4 sépales disposés comme les étamines sur 2 verticilles (2 +2). L'extrémité des sépales externes porte des poils en brosse ce qui est fréquent chez les Brassicacées. En face de chaque grand sépale externe (S1) se trouve une grande glande nectarifère (N1) (Fig4).
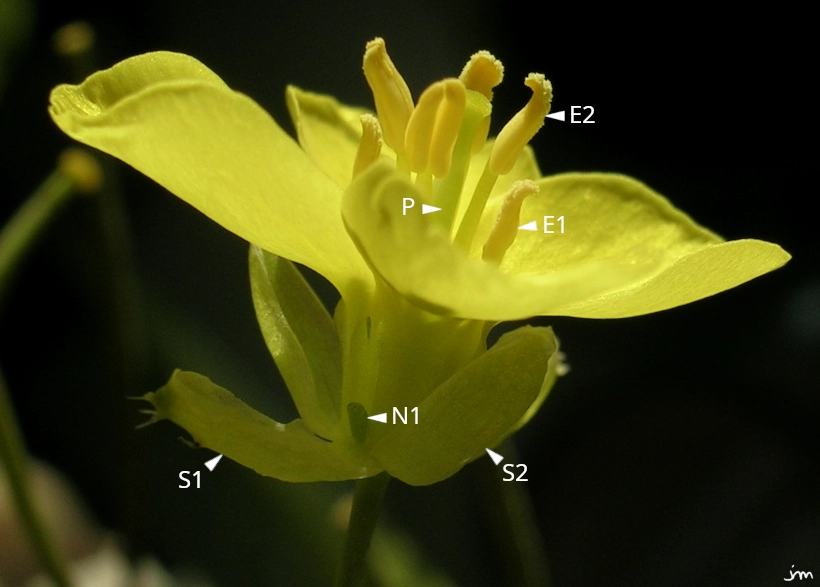
▲ Fig4: Parties de la fleur de Diplotaxis tenuifolia.
(S1 = sépale externe, N1 = Nectaire externe, S2 = Sépale interne,
E1 = Étamine externe, E2 = Étamine interne, P = style du Pistil)
On observe également que les petites étamines (externes) libèrent le pollen vers l'intérieur de la fleur donc vers le pistil alors que les grandes étamines (internes) libèrent le pollen vers l'extérieur de la fleur.
Cette disposition délimite un espace entre les 3 étamines (Les 3 étamines non représentées sont symétriques par rapport au pistil) (Fig5). C'est dans cet espace que la plus grande partie du pollen va être libérée.
Ceci limite les possibilités d'autofécondation et favorise donc l'allogamie.
Néanmoins si toutes les étamines étaient extrorses (*) l'allogamie serait plus stricte. Pour comprendre la fonction de cette disposition il faut examiner la base des étamines.
La dissection montre (Fig6) un nectaire (N2), à la base de chaque petite étamine et vers le pistil.
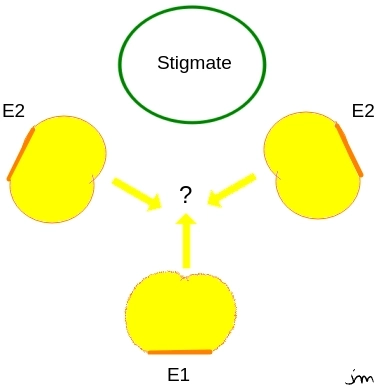
▲ Fig5: Disposition et déhiscence des étamines.
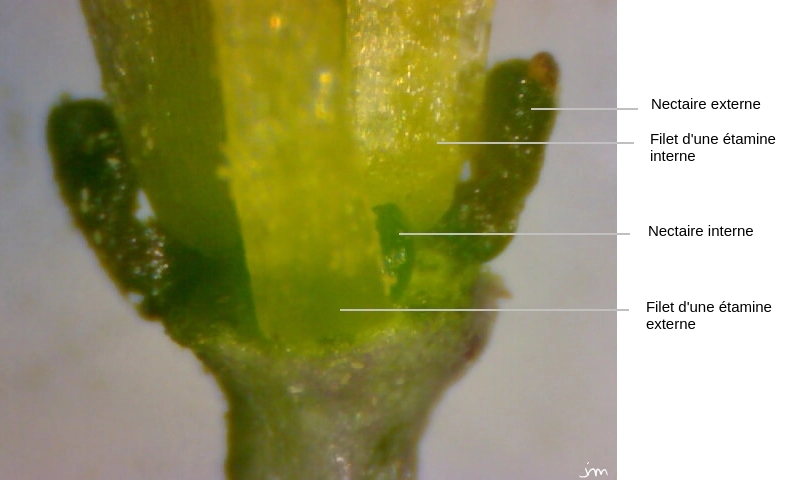
▲ Fig6: Nectaires de la fleur de Diplotaxis tenuifolia (Nectaire interne = N2).
Les nectaires internes (N2) ont une forme différente des nectaires externes (N1) (Fig7).
Sur l'image les petits objets jaunes sont des grains de pollen.
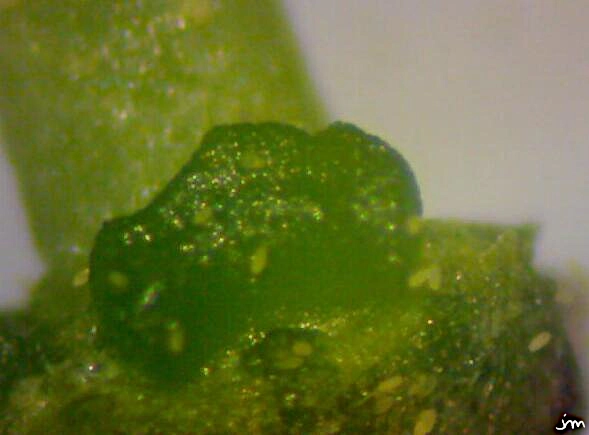
▲ Fig7: Nectaire interne de la fleur de Diplotaxis tenuifolia
On retrouve la même disposition des pièces fertiles chez le colza (Fig8). Dans les 2 cas le pollen est libéré au dessus du nectaire interne.
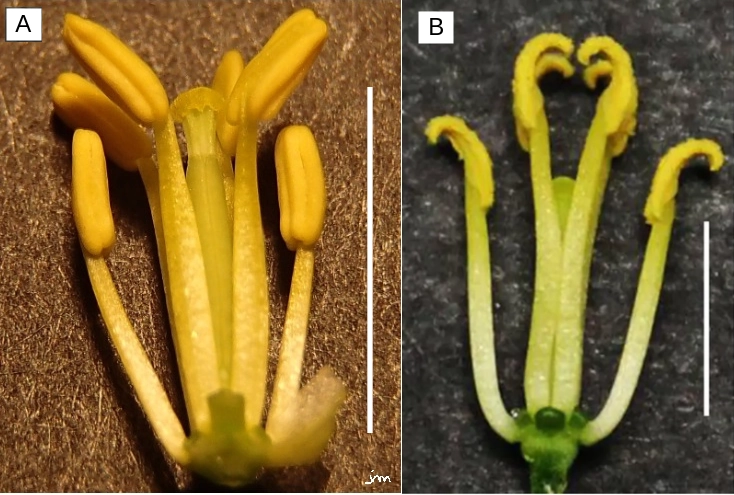
▲ Fig8: Comparaison des androcées de D. tenuifolia (A) et de Brassica napus (B) d'après (1), barres = 5mm
L'ensemble des observations permet de proposer un diagramme floral (Fig9).
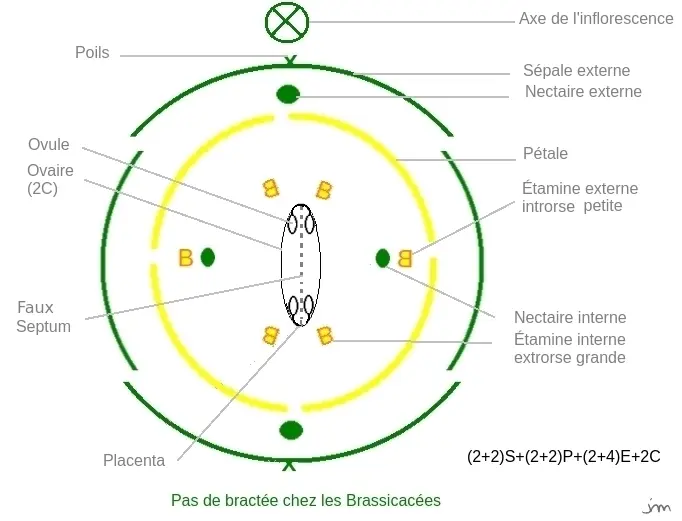
▲ Fig9: Diagramme floral d'après nos observations sur les Diplotaxis sp..
Ce diagramme présente un plan de symétrie passant par l'axe de l'inflorescence et dont le faux septum (**) représente la trace. Cette symétrie bilatérale (Zygomorphie) est assez nette chez D. erucoides et moins marquée chez D. tenuifolia (Fig10).
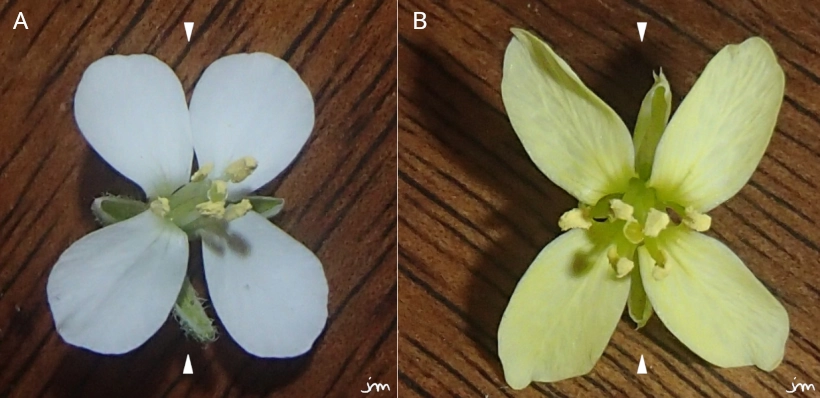
▲ Fig10: Zygomorphie chez les Diplotaxis. (Flèches = trace du plan de symétrie)
D'autres brassicacées ont des fleurs zygomorphes comme les Iberis ou les Moricandia (Fig11). Chez les Iberis les pétales orientés vers l'extérieur sont plus grands ce qui donne à l'inflorescence l'aspect d'une grande fleur.
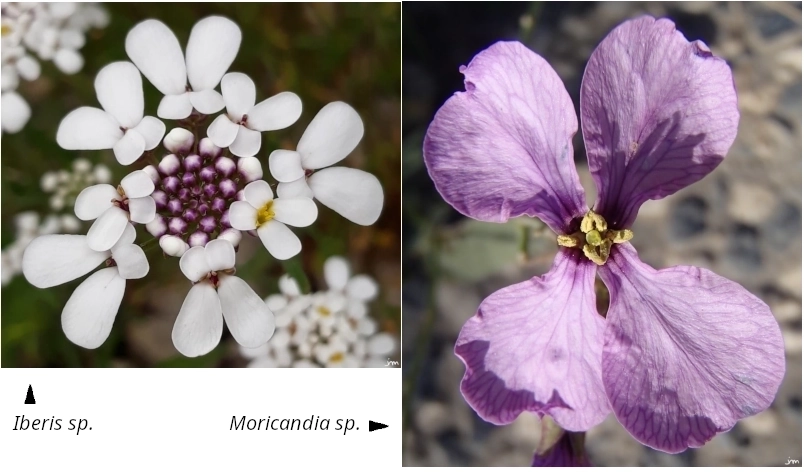
▲ Fig11: Zygomorphie chez Iberis sp. et Moricandia sp..
Dans le genre Moricandia, la zygomorphie variable au cours de la saison permet, par plasticité phénotypique de recruter des pollinisateurs différents d'après (2) et (3).
Ainsi la structure de la fleur des grandes roquettes suggère fortement une pollinisation entomogame.
En effet pour l'animal, la fleur présente des signaux de guidage et un système de récompense.
- la dimension de la fleur épanouie (18 mm)
- la couleur vive des pétales disposés en croix
- la tendance à la zygomorphie
- le parfum de miel émis par les fleurs
- la production de nectar par 2 types de glandes
Ces éléments contribuent au syndrome entomogame.
Une autre adaptation à l'entomogamie réside dans la déhiscence des étamines et la position du nectaire interne. On comprend le fonctionnement de cet ensemble en observant les insectes sur les fleurs.
Pollinisation des Diplotaxis
Les pollinisateurs des roquettes
Les abeilles fréquentent activement les fleurs de roquette jaune pour récolter nectar et pollen (Fig12). Sur l'image la tête de l'abeille est entre les deux pétales juste au dessus du nectaire interne (N2). Dans cette position l'animal reçoit du pollen à la fois des grandes et de la petite étamine.
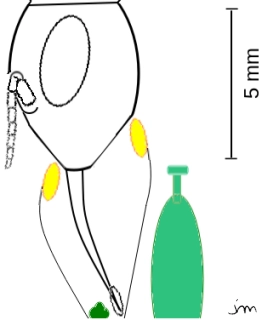
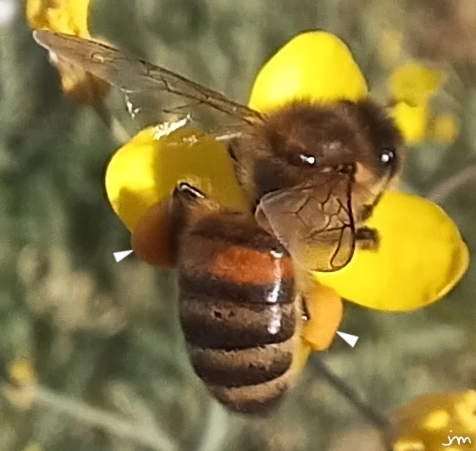
▲ Fig12: Abeille butinant sur Diplotaxis tenuifolia.
(Flèches = pelotes de pollen)
Le pollen hydrophobe-hydrophile
Les plantes entomogames ont généralement un pollen aggloméré par du polenkitt. C'est un mélange lipidique d'huiles essentielles. Il n'y a pas de pollenkitt chez les brassicacées néanmoins le pollen est rendu hydrophobe par un autre mélange qui est caractéristique de la famille : la tryphine.
La tryphine est produite par les cellules du tapis de l'anthère. C'est un mélange de glycoprotéines hydrophiles au contact de l'exine du grain de pollen et de lipides hydrophobes formant une couche externe (4).
La tryphine occupe en partie les cavités des ornementations de l'exine (Fig13).
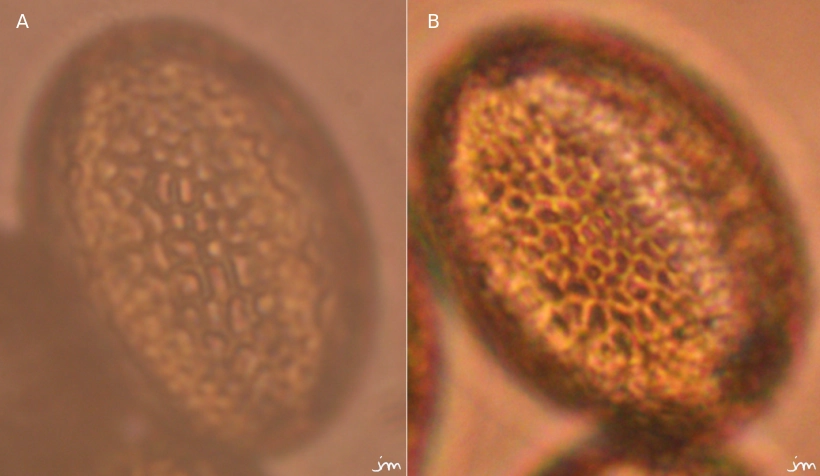
▲ Fig13: Ornementations de l'exine, MO obj x100, montage dans l'eau
(Grand axe ≈ 30 µm, A = D. tenuifolia, B = D. erucoides)
Protogynie et gènes d'incompatibilité sporophytique des brassicacées
Le stigmate étant réceptif avant la déhiscence des étamines, la fleur des Diplotaxis est donc protogyne (11). Cette propriété favorise la pollinisation croisée mais n'exclut pas complètement l'autofécondation.
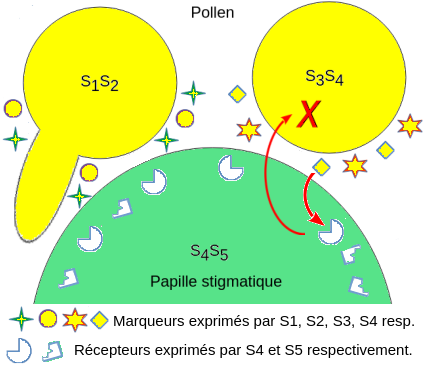
L'auto-fécondation est limitée par le système d'auto-incompatibilité des Brassicaceae. Cette incompatibilité dépend du sporophyte (***) car elle dépend à la fois des 2 allèles des gènes portés par la plante. La tryphine participe à cette incompatibilité car les marqueurs moléculaires d'incompatibilité sont déposés à l'extérieur du grain de pollen (5).
La rencontre des marqueurs polliniques et des récepteurs localisés sur les cellules papilleuses du stigmate déclenche une cascade de réaction (Fig14).
Dans le premier cas, aucun des marqueurs exprimés sur le pollen de la plante (S1S2) n'est reconnu par les récepteurs de la cellule stigmatique de génotype (S4S5). En conséquence le pollen peut germer.
Dans l'autre cas, le marqueur de type MS4 exprimé sur le pollen de la plante (S3S4) est reconnu par un récepteur spécifique de type RS4 de la plante (S4S5). La fixation déclenche une cascade de réactions qui aboutissent à un signal inhibiteur de la germination du grain de pollen.
Après fécondation les filets des étamines et les pétales de D. erucoides deviennent violets (Fig15) mais pas ceux de la roquette jaune qui simplement se fanent. Ces transformations sont un signal perçu par les pollinisateurs qui visitent moins les fleurs devenues violettes.
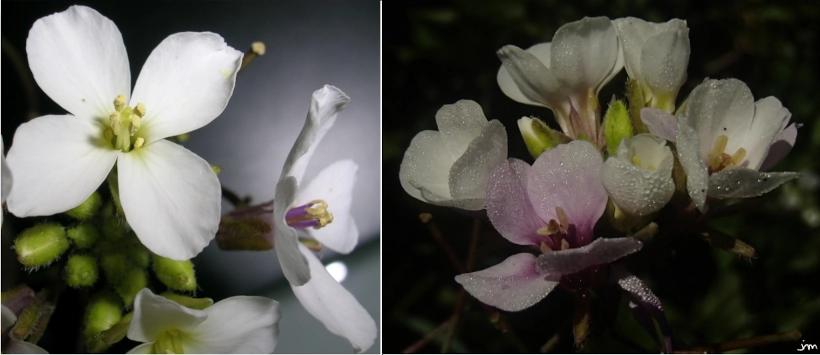
▲ Fig15: Signalisation post-fécondation chez Diplotaxis erucoides.
Niveau de ploïdie des Diplotaxis
Les diplotaxes présentent des barrières à l'autofécondation mais dans la famille des brassicacées les barrières interspécifiques sont souvent contournées. Ainsi le colza Brassica napus provient de l'hybridation interspécifique : Brassica oleracea (chou, n = 9) X Brassica rapa (navet, n = 10) suivie d'une duplication complète. Il en résulte une addition des génomes et l'apparition d'une espèce nouvelle à n = 19 chromosomes (2n = 38).
Ce type d'évènement s'est produit dans le genre Diplotaxis (Fig16).
Fig16: Niveau de ploïdie des Diplotaxis provençales d'après (7).
| Espèce | Ploïdie (2n) |
| D. tenuifolia | 22 |
| D. muralis | 42 |
| D. viminea | 20 |
| D. erucoides | 14 |
Les niveaux de ploïdie suggèrent que D. muralis (2n = 42) résulte de l'hybridation interspécifique D. tenuifolia x D. viminea. La réunion des gamètes (n = 11 et n = 10) produit une cellule à 21 chromosomes qui par duplication complète produit un organisme à 2n = 42 chromosomes. Un autre argument est la colinéarité de leurs gènes (8).
Après la fécondation, les ovules se transforment en graines et l'ovaire devient le fruit.
Le fruit typique des Brassicaceae
Le genre tire son nom de la disposition des graines dans le fruit ; diplo- double, -taxis rangée (Fig18). Après l'ouverture du fruit une membrane persiste, le faux septum. Sa bordure présente un épaississement qui est la zone placentaire (Fig19).
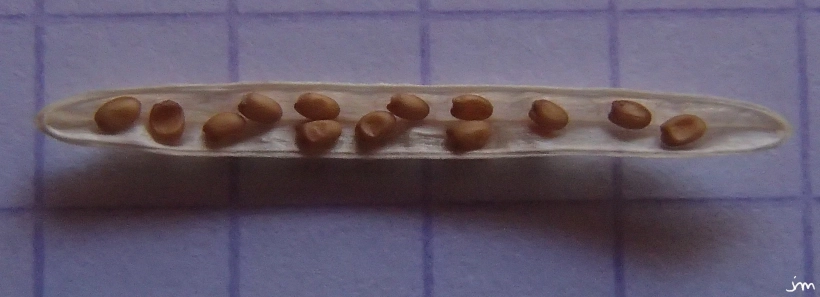
▲ Fig18: Graines dans le fruit de Diplotaxis tenuifolia, une valve a été enlevée.
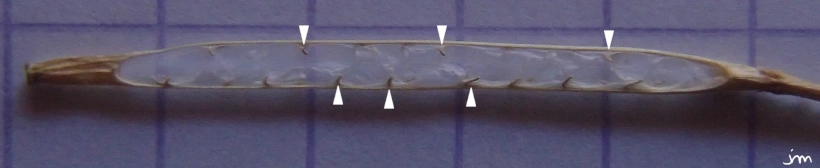
▲ Fig19: Septum d'un fruit de Diplotaxis. (Flèches = insertions placentaires)
Le fruit sec est déhiscent par 4 fentes (Fig20). C'est donc une silique avec comme particularité du genre de porter 2 rangées de graines par loge.
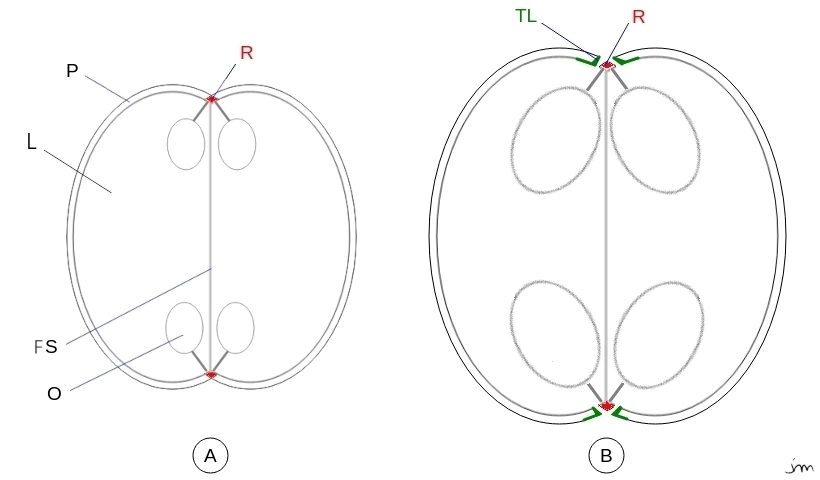
▲ Fig20: Fruit des Diplotaxis, A : en développement, B : à maturité
(P = péricarpe, L = loge, O = ovule, R = replum, FS = faux septum, TL = tissu lignifié) d'après (9)
La germination des graines de Diplotaxis
Les graines (Fig21) sont de petite taille à dispersion barochore (****). Elles ne tombent pas loin de la plante mère ce qui explique l'abondance observée.
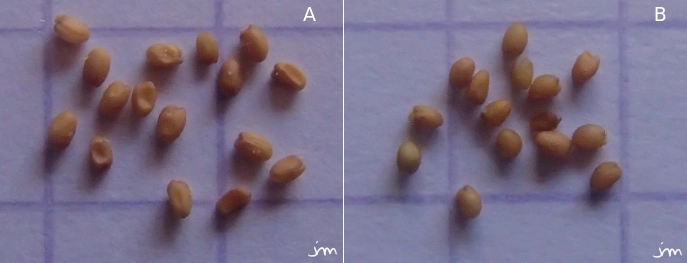
▲ Fig21: Graines de Diplotaxis, (A = D. tenuifolia, B = D. erucoides).
Les graines sont ovoïdes. Leur plus grande dimension n'est pas significativement différente si bien qu'on peut proposer la dimension moyenne de 1,1 ± 0,04 mm pour l'ensemble des deux espèces. Les graines de D. tenuifolia que nous avons examiné présentent une dépression. Elles sont peut être davantage déshydratées.
Les graines ne sont pas dormantes. Elles peuvent germer dès qu'elles sont mûres (10). Néanmoins la dormance s'installe lors de la conservation des graines déshydratées ou bien dans le sol.
À température ambiante (20°C), la germination des graines récentes est très rapide (Fig22).
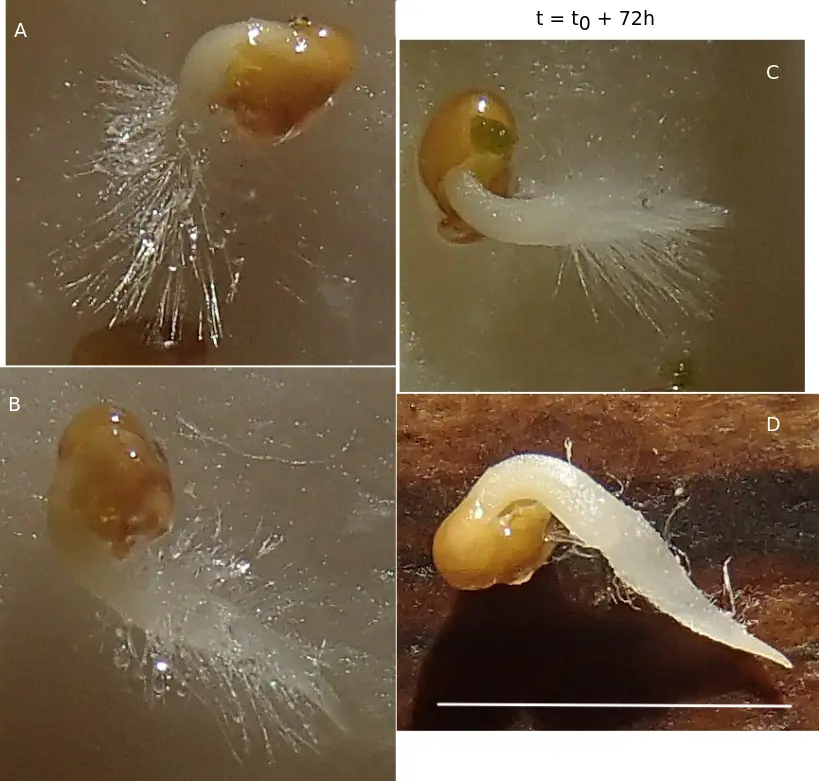
▲ Fig22: Graines germées de Diplotaxis, barre = 4 mm.
Les radicules développées apparaissent en 72 h et les cotylédons en 96 h. La radicule porte de nombreux poils absorbants (images A, B, C) et l'apex est fin et pointu (image D).
Bilan:
Les Diplotaxis provençales sont un bon modèle de la famille des Brassicacées et de l'organisation florale en général.
Avantages des
Enfin leur multiplication semble facile, elles sont d'ailleurs cultivées à des fins alimentaires dans des pays méditerranéens.
Remarques:
▲ (*) Extrorse qualifie l'ouverture des anthères des étamines donc la libération du pollen vers l'extérieur de la fleur par opposition à introrse, vers l'intérieur.
▲ (**) En botanique le faux septum est une cloison séparant le fruit et qui résulte d'une prolifération tardive de la zone placentaire alors que le septum provient de la prolifération des carpelles.
▲ (***) Chez les plantes on distingue 2 organismes au cours du cycle reproducteur : Le sporophyte diploïde qui produit des spores haploïdes et le gamétophyte haploïde qui produit les gamètes participant à la reproduction. Chez les plantes à fleur ces organismes sont emboîtés et les gamétophytes sont microscopiques. Le gamétophyte (prothalle) mâle est le pollen alors que le gamétophyte (prothalle) femelle est le sac embryonnaire.
▲ (****) La dispersion barochore ne fait intervenir que la gravité.
Références: